- Imprimer
- Partager
- Partager sur Facebook
- Partager sur LinkedIn
Projets de recherche
META-Q
Étude des mécanismes de biosynthèse de l’UQ chez les bactéries
(L. Pelosi, F. Pierrel et O. Lerouxel)
Chez Escherichia coli, la biosynthèse de l'UQ implique 9 réactions chimiques et 12 protéines Ubi (UbiA à UbiK) (Figure 1). Les 6 dernières réactions de la voie ont lieu dans les extraits solubles et non dans la fraction membranaire comme le prédirait l'hydrophobicité de l’UQ (Figure 1). En effet, nous avons montré qu'un complexe Ubi soluble existe chez E. coli et forme un métabolon. La protéine membranaire UbiB faciliterait l'accès du complexe Ubi aux précurseurs précoces situés dans la membrane, et permettrait le relargage de l'UQ synthétisé. Dans E. coli, la biosynthèse de l'UQ dépend de l'oxygène, car les monooxygénases UbiI, UbiH et UbiF utilisent l'O₂ comme cosubstrat. Toutefois, E. coli produit également de l’UQ en anaérobies grâce aux protéines UbiU, UbiT et UbiV, qui sont essentielles dans ce contexte. UbiU et UbiV remplacent les monooxygénases de la voie aérobe en catalysant les étapes d'hydroxylation de celle anaérobe. Nous nous intéressons à disséquer au niveau moléculaire l'assemblage du métabolon Ubi et ses changements structurels et fonctionnels liés aux conditions en O2.
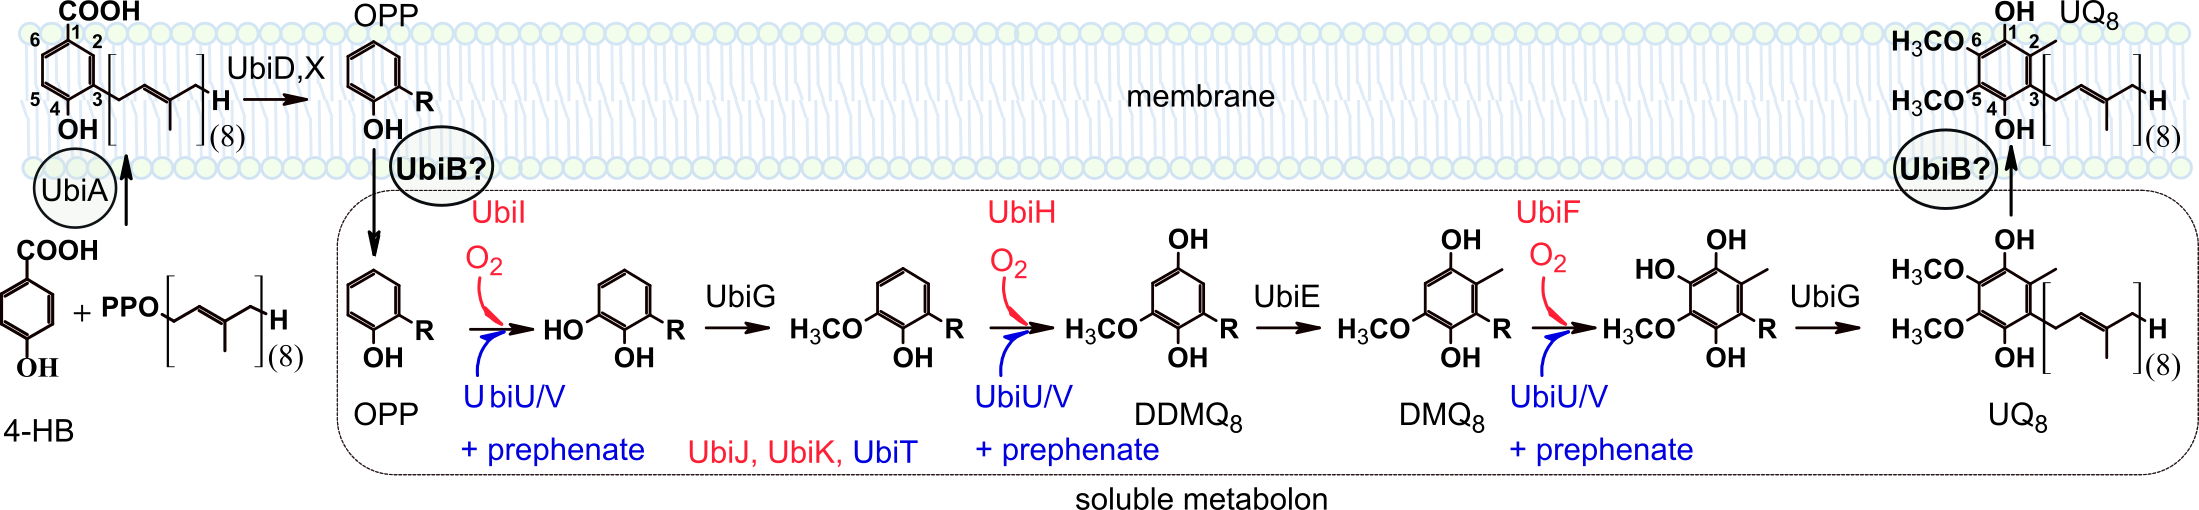
Figure 1: Modèle de la biosynthèse de l’UQ chez E. coli avec les protéines spécifiques des voies O2-dépendante et O2-indépendante représentées respectivement en rouge (UbiIHFJK) et en bleu (UbiUVT). R = chaîne octaprényle.
Trois questions sont principalement abordées : Comment le complexe produit-il un environnement isolant les intermédiaires hydrophobes du cytoplasme hydrophile et rendant possible un mécanisme de channeling des enzymes Ubi au sein du métabolon ? Comment le complexe module-t-il structurellement sa composition pour avoir les hydroxylases nécessaires en fonction des conditions en O2 ? Par quel mécanisme, UbiB interagit-il avec le complexe Ubi ?
Ce projet est soutenu par l’ANR (projet META-Q, 2026-2030) et par la Graduate School de l’UGA.
Quinobiota
Étude des échanges de précurseurs de quinones dans le microbiote intestinal
(F. Pierrel, L. Pelosi et O. Lerouxel)
Le projet QUINOBIOTA étudie les échanges de précurseurs de quinones dans le microbiote intestinal, en ciblant la biosynthèse de la ménaquinone (MK), impliquant une dizaine d’enzymes. Nous avons observé que de nombreuses bactéries intestinales ne possèdent que les deux dernières enzymes de cette voie, dont la prényltransférase MenA. Nos résultats indiquent que MenA s’est diversifiée pour utiliser divers précurseurs de MK, apportés par l’alimentation ou des bactéries à voie complète (Figure 2). En combinant biochimie, analyses omiques, phylogénétique et biologie structurale, nous visons à 1) caractériser la fonction et l’évolution des prényltransférases ; 2) cartographier la disponibilité et l’utilisation des précurseurs de MK dans l’intestin de la souris ; 3) éclairer la régulation de la production de MK et son impact métabolique ; 4) proposer un scénario évolutif pour les voies MK incomplètes, notamment dans le microbiote.
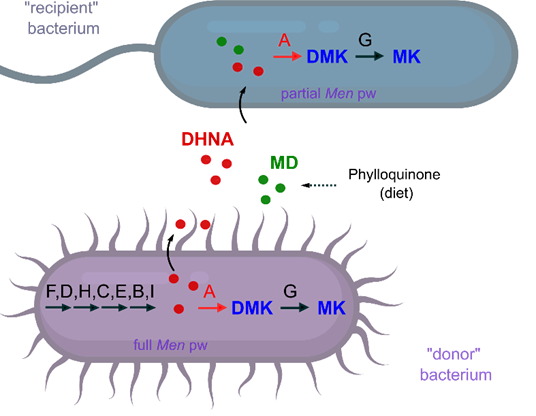 Figure 2: Biosynthèse de MK dans une bactérie receveuse dont la voie est incomplète à partir de précurseurs fournis par l’alimentation ou par une bactérie donneuse dont la voie est complète.
PHEYDR
Développement d’antimicrobien visant la voie de biosynthèse de l’ubiquinone en anaérobie
(L. Pelosi & O. Lerouxel)
La biosynthèse de l’UQ est partagée entre de nombreuses bactéries et les eucaryotes, ce qui limite l’intérêt d’un ciblage global de cette voie à des fins antimicrobiennes en raison du risque d’affecter également l’hôte. Nous avons montré que les protéines UbiU/UbiV, appartenant à la famille bactérienne des « peptidases U32 », sont des hydroxylases spécifiques de la biosynthèse anaérobie de l’UQ et utilisent le préphénate comme donneur de groupement hydroxyle (Figure 3). Nous proposons de développer des analogues non aromatisables du préphénate afin d’inhiber cette nouvelle classe d’enzymes. Cette stratégie présente une forte sélectivité, car les peptidases U32 sont absentes chez les eucaryotes et la voie de biosynthèse des acides aminés aromatiques, dont dérive le préphénate, n’existe pas chez l’Homme.
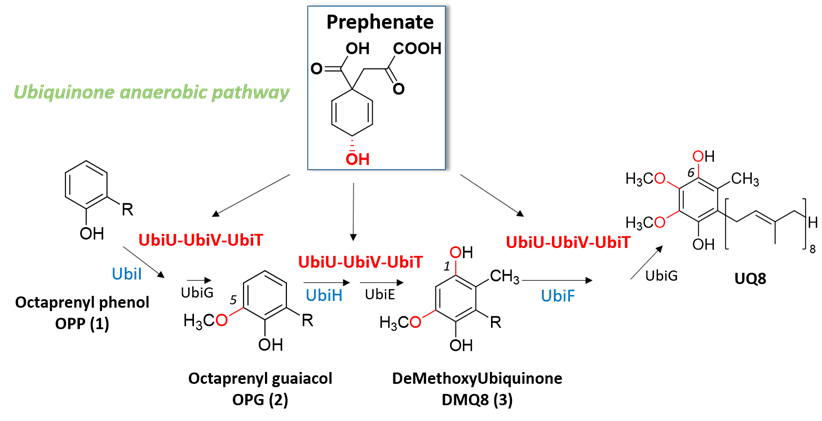
Figure 3 : Voie biosynthétique anaérobie proposée pour l’UQ8 chez E. coli. En rouge, UbiU/UbiV, les protéines dépendantes du préphénate catalysant l’insertion des trois atomes d’oxygène aux positions C1, C5 et C6 du noyau aromatique, ainsi qu’UbiT en tant que protéine accessoire. En bleu, UbiI, UbiH et UbiF, les trois hydroxylases dépendantes de l’O₂ et de la flavine qui participent à la voie aérobie. En noir, UbiG et UbiE, les deux méthyltransférases communes aux voies aérobies et anaérobies.
Parmi les bactéries ciblées, Pseudomonas aeruginosa représente un pathogène d’intérêt majeur. Cette bactérie opportuniste, impliquée notamment dans la mucoviscidose et les infections sévères, est capable de croître en conditions anaérobies via la dénitrification, en utilisant nitrate et nitrite comme accepteurs terminaux d’électrons. Ce métabolisme est considéré comme essentiel à sa persistance dans les voies respiratoires des patients atteints de mucoviscidose. Notre consortium ayant démontré qu’UbiU et UbiV sont indispensables à la dénitrification chez P. aeruginosa, cette bactérie constitue donc une cible prioritaire pour notre approche de développement d’antimicrobiens.
Ce projet est soutenu par l’ANR (Projet PHEYDR, 2023-2027).
MolQui
Exploration de la diversité des quinones isoprénoïdes
(F. Pierrel & S. Abby)
Le projet MolQui, à l’intersection de la biologie, de la chimie et de la bioinformatique, explore la diversité des quinones isoprénoïdes produites par les organismes vivants. Actuellement, cette diversité n’est documentée que pour une minorité d’organismes cultivables. Grâce à de la lipidomique environnementale par spectrométrie de masse, nous accédons aux quinones d’organismes non cultivables. Une analyse en réseaux moléculaires révèle de nouvelles quinones parmi les lipides étudiés (Figure 4). Nous cherchons ensuite à les purifier et caractériser, et à identifier les organismes et enzymes impliqués dans leur biosynthèse. Ces travaux permettront de mieux comprendre la diversification des métabolismes microbiens en lien avec l’évolution géochimique, comme notre découverte récente de la méthyl-plastoquinone qui suggère que la respiration aérobie a précédé le grand choc oxydatif (PNAS 2025).
Ce projet est soutenu par l’UGA (Projet Q-MolNet, 2025-2027) et par le PEPR Origin (Projet MolQui 2026-2028)
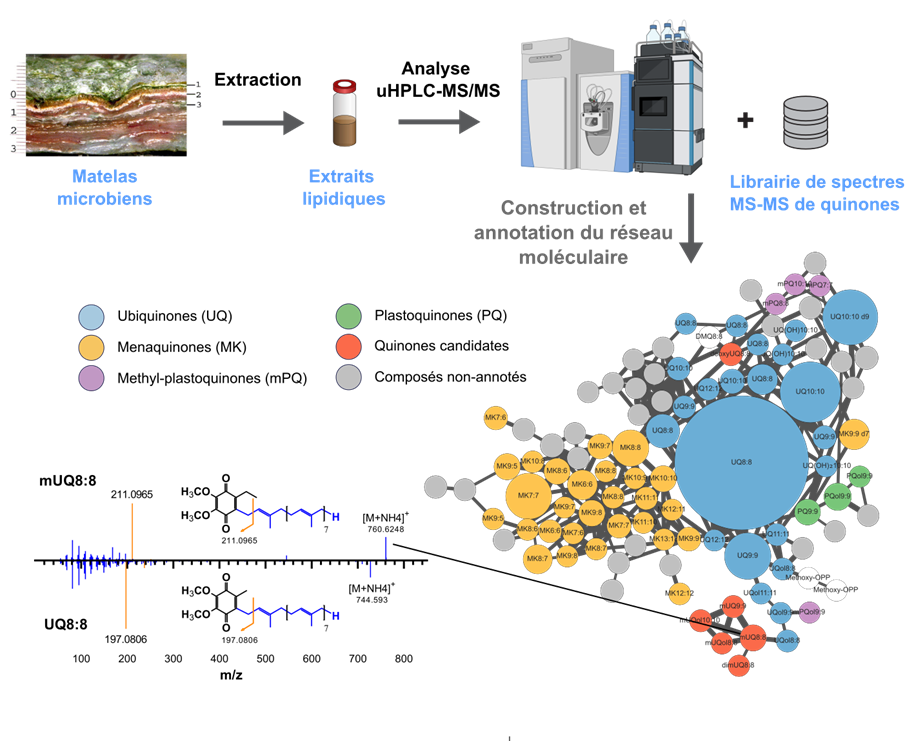
Figure 4: Réseau moléculaire permettant la découverte de nouvelles quinones sur la base de leur spectre de fragmentation.
APICOQ
Étude des mécanismes de biosynthèse du coenzyme Q chez les eucaryotes et en particulier chez les Apicocomplexa
(L. Pelosi & O. Lerouxel)
Les parasites du phylum des Apicomplexes, notamment Plasmodium falciparum et Toxoplasma gondii, sont responsables de pathologies majeures telles que le paludisme et la toxoplasmose, représentant un enjeu important de santé publique mondiale. L’absence de vaccins pleinement efficaces et l’émergence croissante de résistances aux traitements antiparasitaires soulignent la nécessité d’identifier de nouvelles cibles thérapeutiques. L’atovaquone, un antiparasitaire à large spectre, agit comme antagoniste compétitif du coenzyme Q (CoQ) en inhibant spécifiquement le complexe cytochrome bc1 de la chaîne respiratoire mitochondriale parasitaire, entraînant une altération de la respiration cellulaire et de la biosynthèse des pyrimidines, conduisant à la mort du parasite. Toutefois, son utilisation clinique est limitée par l’apparition rapide de résistances.
Dans ce contexte, la voie de biosynthèse du CoQ constitue une cible thérapeutique prometteuse. Le CoQ est une molécule redox hautement conservée au cours de l’évolution, essentielle à la respiration mitochondriale, à la β-oxydation des acides gras, à la synthèse des pyrimidines et à la défense antioxydante. Sa biosynthèse, largement caractérisée chez la levure et chez l’Homme, implique au moins neuf protéines mitochondriales codées par le noyau (COQ2 à COQ10). Parmi elles, COQ2 catalyse l’ajout de la chaîne polyisoprénylée au noyau aromatique dérivé du 4-hydroxybenzoate, tandis que COQ3, COQ5, COQ6 et COQ7 assurent les modifications successives du noyau benzoquinonique (Figure 5). Plus récemment, COQ4 a été identifié dans notre groupe comme une décarboxylase oxydative impliquée dans une étape terminale de la biosynthèse. Chez les Apicomplexes, cette voie demeure cependant peu caractérisée. Bien que plusieurs homologues des protéines COQ aient été identifiés, l’absence apparente de certaines enzymes essentielles, notamment COQ6 et COQ7, suggère l’existence de voies biosynthétiques alternatives, spécifiques à ces parasites, susceptibles de constituer de nouvelles cibles pour le développement de stratégies antiparasitaires innovantes. Nous nous efforçons actuellement de répondre à cette question.
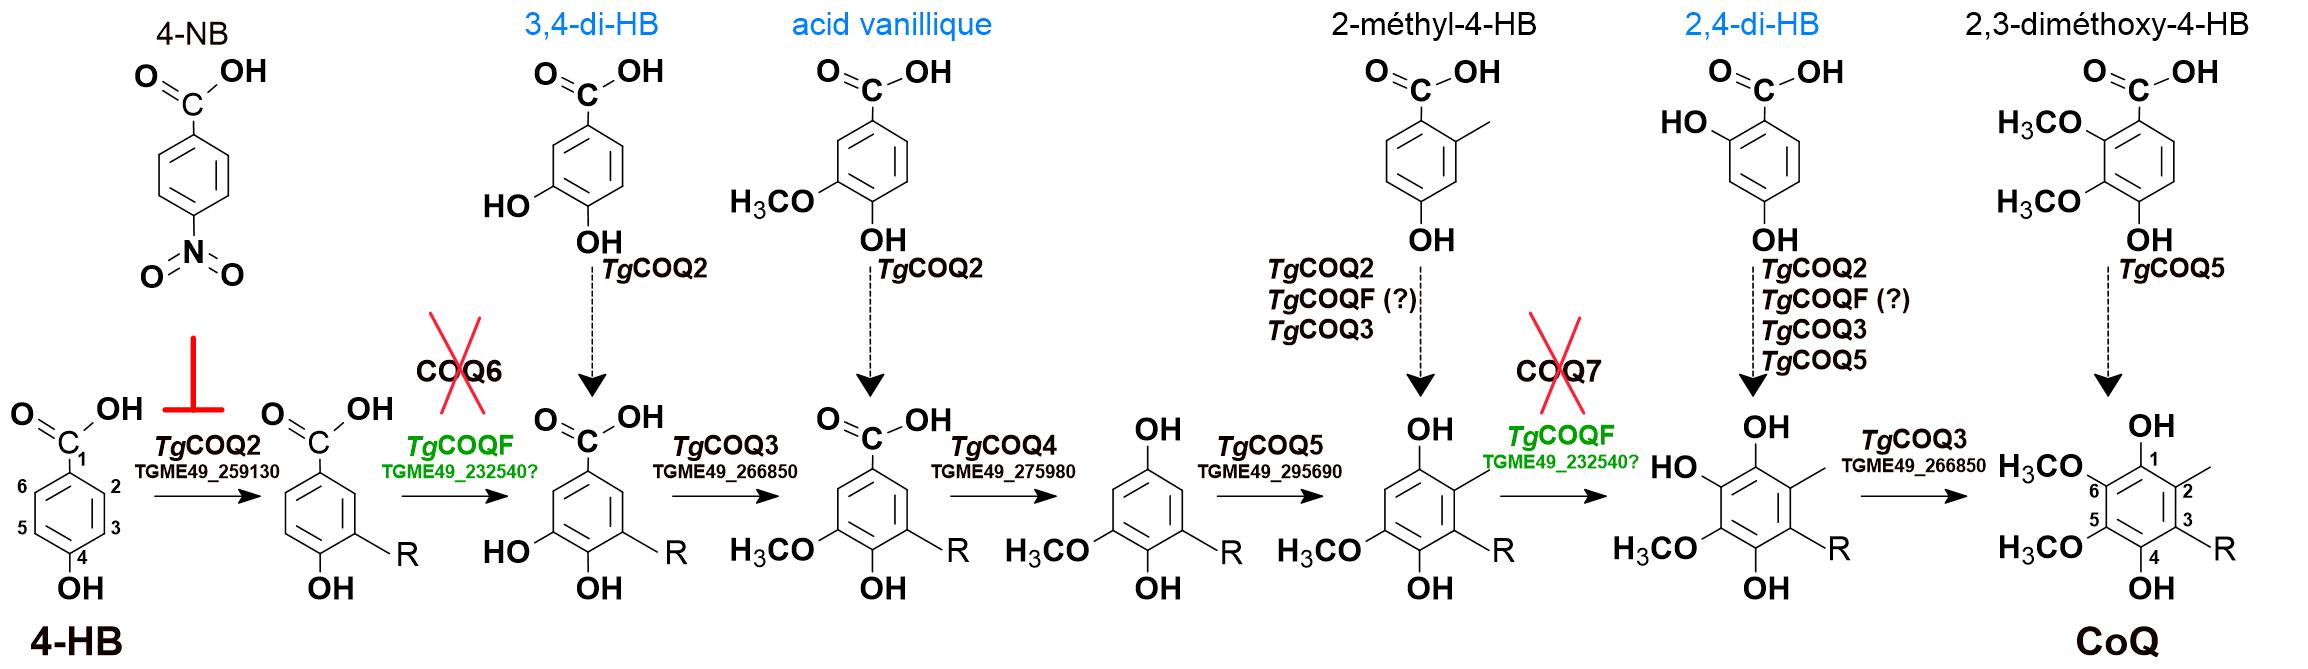
Figure 5 : Modèle proposé de la voie de biosynthèse du CoQ chez T. gondii. La protéine candidate (TgCOQF), impliquée dans les étapes d’hydroxylation aux carbones 5 et 6 du noyau benzoquinonique, est indiquée en vert. Au-dessus de la voie sont représentés des analogues du 4-HB susceptibles de compenser des déficiences spécifiques d’une enzyme TgCOQ. En bleu figurent ceux qui ont été testés expérimentalement dans la littérature chez l’Homme et la levure. R : chaîne heptaprénylée.
Ce projet est soutenu par un financement Initiatives de Recherche Grenoble Alpes (IRGA)
IDS
Longueur de la chaine des quinones : causes et conséquences
(F. Pierrel, S. Abby, N. Varoquaux)
La longueur de la chaîne isoprénoïde des quinones varie selon les espèces, mais les raisons de ces variations restent inconnues. Ces chaînes sont synthétisées par des isoprényl-diphosphate synthases (IDS2) qui assemblent des molécules d’IPP (Figure 6). Toutefois, il n’est actuellement pas possible de prédire la longueur de la chaîne à partir de la séquence de l’IDS. Pour élucider les bases moléculaires du fonctionnement des IDS, nous combinons biochimie, biologie structurale et analyses de séquences. Nous exploitons une base de données répertoriant la longueur des chaînes de quinones de plus de 6 000 espèces bactériennes (mSystems 2026) et étudions les IDS des légionelles, connues pour produire des chaînes très longues. Ces travaux permettront ensuite d’explorer, à grande échelle, les liens entre la longueur des chaînes de quinones et la composition lipidique des membranes microbiennes.
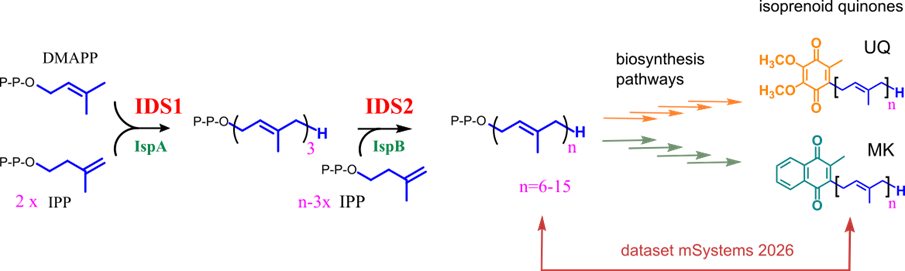
Figure 6: IDS2 biosynthétise la chaîne isoprénoïde des quinones, dont la longueur est actuellement impossible à prédire.
Participants
Membres du groupe
Ludovic PELOSI (Professeur UGA)
Fabien Pierrel (DR CNRS)
Olivier Lerouxel (Maître de Conférences UGA)
Julie Michaud (Ingénieure de Recherche UGA)
Tuan Anh Dinh (Doctorant)
Emma Bouvet (Doctorante)
Rawane Hamze (Doctorante)
Arthur Reveillard (Doctorant)
Collaborations externes
Murielle Lombard, Marc Fontecave (LCPB, Collège de France, Paris)
Frédéric Barras (SAMe, Institut Pasteur, Paris)
Michaël Cherrier et Yvain Nicolet (IBS, Grenoble)
Félix Elling (Heidelberg)
Antoine Taly (IBPC, Paris)
Martial Rey (IGF, Montpellier)
Max Bonomi (Computational Structural Biology, Institut Pasteur, Paris)
Sophie Jarraud et Christophe Ginevra (CIRI, Lyon)
Axel Magalon (LCB, Marseille)
Barbara Schoepp-Cothenet, Frauke Baymann, Eric Pilet, Marianne Guiral (BIP, Marseille)
Financements récents
2026-2028, projet TolQuin (ANR-25-CE02-6248), porteuse S. Abby
2026-2028, projet MolQui (PEPR Origin), porteuse S. Abby
2026, projet APICOQ, Initiatives de Recherche Grenoble Alpes, porteur L. Pelosi
2026, projet Anaero-Ubi, graduate school Chimie Biologie Santé (ANR-17-EURE-0003), porteur L. Pelosi
2025-2029, projet META-Q (ANR-25-CE11-3606), porteur L. Pelosi.
2025-2027, projet Q-MolNet, UGA, porteur F. Pierrel
2023-2027, projet PHEYDR (ANR-23-CE44-0015), partenaire L. Pelosi
2023-2024, projet Quinobiote, UGA, porteur F. Pierrel
Publications sélectionnées
- Imprimer
- Partager
- Partager sur Facebook
- Partager sur LinkedIn